Resilienz und Kollaps in der Ökologie
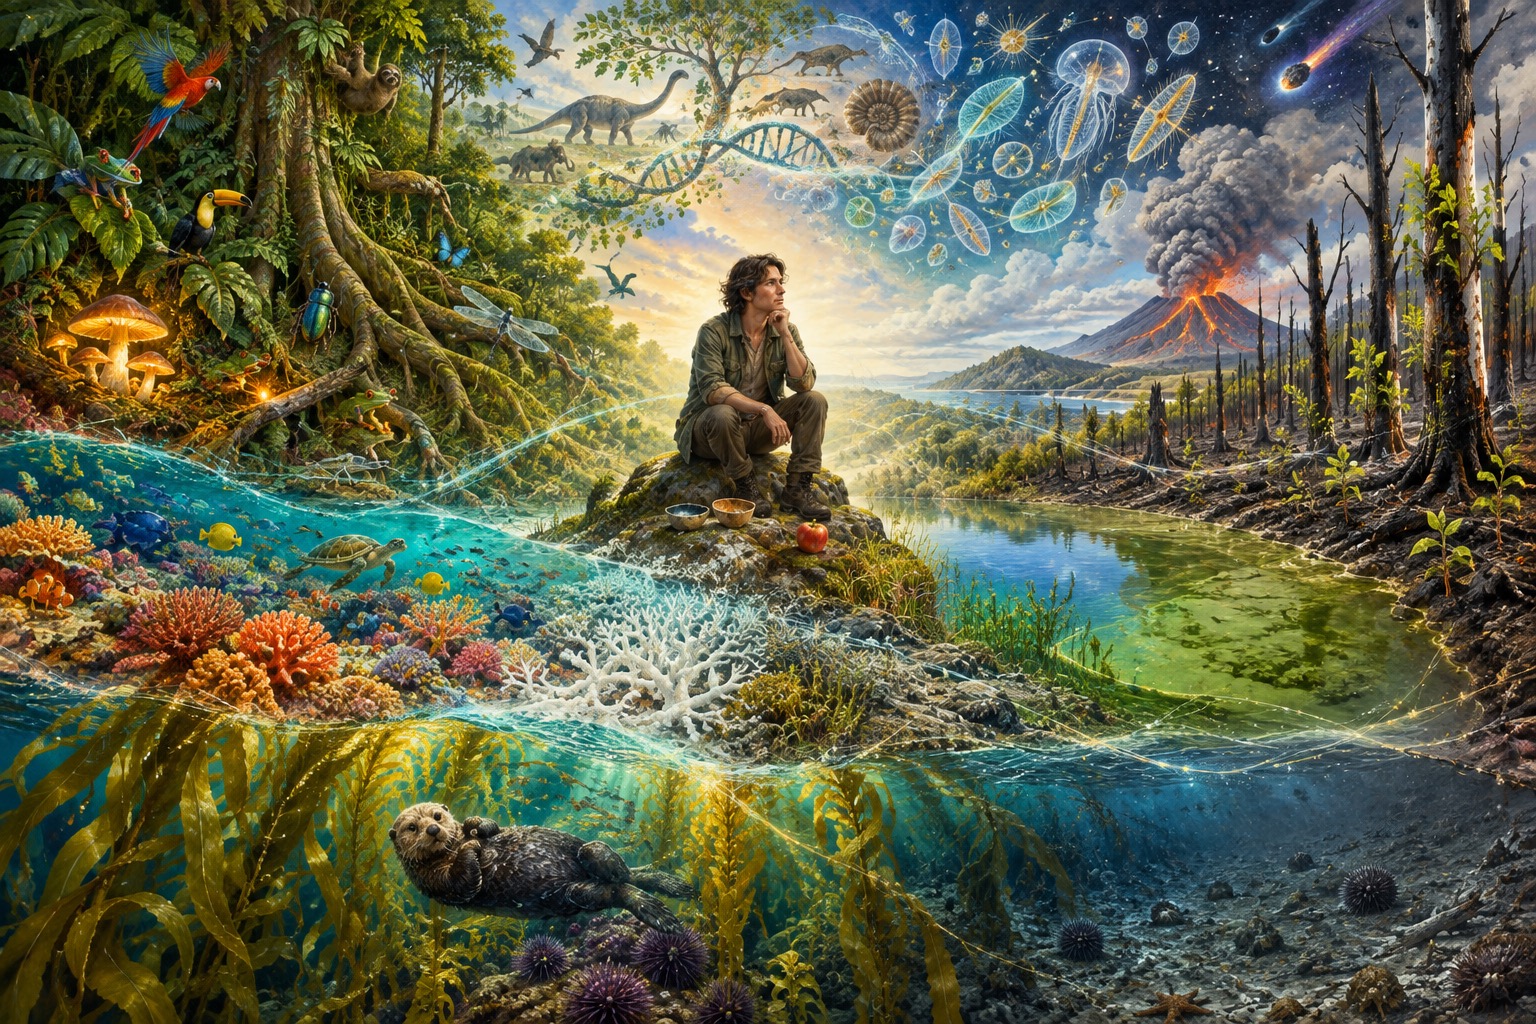
Ökologie
Die Ökologie, die Biologie, die belebte und die unbelebte Natur sind für mich persönlich seit jeher etwas, das mich zutiefst fasziniert und erfüllt, ja glücklich macht.
Die Beschäftigung mit Tieren und Pflanzen, und jenen Organismen, die weder das eine, noch das andere sind, mit ihren ökologischen Eigenschaften, mit der Biologie insgesamt, aber auch mit der Komplexität biogeochemischer Prozesse und Stoffwechselwege, die kalte, klare Logik der Evolution, hat mich immer schon in ihren Bann gezogen.
Während mich von Menschen geschaffene Systeme – seien es Finanzwirtschaft, Kunst, Städte, Wirtschaftswissenschaft, Juristerei oder Philosophie – irgendwann langweilen und mir vergleichsweise rasch banal erscheinen, schafft es die Natur immer wieder, mein Interesse, mein Feuer und meine Neugier wachzuhalten. Da wird es mir niemals langweilig.
Es ist die gewaltige Komplexität, die unglaubliche Vielfalt und die intellektuelle Herausforderung, welche die Natur bietet. Aber ebenso ist es der ganz unmittelbare, sinnliche Genuss ihrer Schönheit: die geradezu erschlagende Üppigkeit eines tropischen Korallenriffs im Sonnenlicht oder das Mysteriöse und Unheimliche eines tropischen Regenwaldes in der Nacht, mit fluoreszierenden Pilzen am Boden und reflektierenden Augen, die einen plötzlich aus der Dunkelheit anstarren, wenn man mit der Stirnlampe in den nächtlichen Wald leuchtet.
Die Natur ist für mich – abgesehen von meiner Tochter – das Einzige, von dem ich wirklich zutiefst sagen kann: Dafür ist es wert zu leben.
Abgesehen von meinen Verpflichtungen als Vater besteht für mich persönlich ein wesentlicher Sinn des Lebens darin, die belebte und unbelebte Natur aufzusaugen, zu genießen, zu beobachten, zu erforschen und möglichst viel von ihr zu verstehen. Die Schöpfung zu feiern!
Und vor diesem Hintergrund bitte ich euch auch um Nachsicht, wenn ich in meiner heutigen Zeichnung gelegentlich ein wenig abschweife. Manchmal muss dieser Faszination einfach ein bisschen Raum gegeben werden.
Bevor ich mich mit der Resilienz und dem Kollaps von Ökosystemen beschäftige, möchte ich zunächst drei Begriffe klären, die schon im Titel meiner Zeichnung vorkommen: Ökologie, Resilienz und Kollaps.
Der Begriff Ökologie
Der Begriff Ökologie wurde 1866 vom deutschen Zoologen Ernst Haeckel geprägt. Er setzt sich aus den griechischen Wörtern oikos, also Haus oder Haushalt, und logos, Lehre, zusammen. Wörtlich ist Ökologie damit die „Lehre vom Haushalt“. Haeckel verstand darunter die Wissenschaft von den Beziehungen eines Organismus zu seiner Umwelt. Heute definieren wir Ökologie etwas umfassender als die Wissenschaft von den Beziehungen der Lebewesen untereinander und zu ihrer belebten und unbelebten Umwelt. Das klingt zunächst recht einfach. Tatsächlich verbirgt sich dahinter aber eine Wissenschaft von außerordentlicher Komplexität. Ein Ökosystem besteht nicht nur aus verschiedenen Arten. Jede dieser Arten steht mit anderen Arten in Beziehung, konkurriert um Ressourcen, dient anderen als Nahrung oder ernährt sich von ihnen, verändert ihre Umwelt und wird gleichzeitig von Temperatur, Wasser, Licht, Nährstoffen und zahllosen weiteren Faktoren beeinflusst. Auf diese Komplexität werde ich später noch ausführlicher zurückkommen.
Der zweite Begriff ist Resilienz.
Er stammt vom lateinischen resilire: zurückspringen oder zurückprallen. Ursprünglich bezeichnet der Begriff also die Fähigkeit, nach einer Verformung oder Störung wieder in einen vorherigen Zustand zurückzukehren. In die Ökologie wurde der Begriff vor allem durch den kanadischen Ökologen Crawford Stanley Holling eingeführt. In seiner klassischen Arbeit von 1973 unterschied er dabei bereits zwei Vorstellungen von Stabilität. Einerseits kann ein System kleinen Störungen widerstehen. Andererseits kann es erheblich verändert werden und trotzdem seine grundlegende Struktur und Funktionsweise bewahren. Ökologische Resilienz bedeutet daher vereinfacht: Wie viel Störung kann ein Ökosystem verkraften, ohne in einen grundsätzlich anderen Zustand überzugehen?
Damit kommen wir zum dritten Begriff: Kollaps.
Das Wort stammt vom lateinischen collabi, zusammenfallen oder zusammenstürzen. Bei einem ökologischen Kollaps bedeutet das aber keineswegs, dass plötzlich alles tot ist. Ein Ökosystem kann kollabieren und danach weiterhin voller Leben sein. Entscheidend ist vielmehr, dass seine bisherige Struktur, seine charakteristischen Lebensgemeinschaften und wesentliche Funktionen verloren gehen und das System in einen anderen Zustand übergeht. Und genau um diese Grenze soll es heute gehen: Warum können Ökosysteme über lange Zeit erstaunlich stabil sein, obwohl sie ständig Störungen ausgesetzt sind – und warum können sie dann manchmal innerhalb erstaunlich kurzer Zeit fundamental kippen?
Von der Resilienz des Individuums zur Resilienz des Lebens
Bevor wir uns mit ganzen Ökosystemen beschäftigen, möchte ich Resilienz und Kollaps zunächst auf verschiedenen Ebenen betrachten. Beginnen wir mit der kleinsten Ebene, die uns unmittelbar vertraut ist: dem einzelnen Organismus. Nehmen wir einen Menschen, der an einer Virusinfektion erkrankt. Die Infektion ist eine Störung. Körperzellen werden geschädigt, Entzündungsreaktionen entstehen, der Stoffwechsel verändert sich, wir bekommen Fieber und fühlen uns krank. In den meisten Fällen reagiert der Organismus darauf. Das Immunsystem bekämpft das Virus, beschädigtes Gewebe wird repariert, die Entzündungsreaktion klingt ab – und nach einiger Zeit befinden wir uns wieder ungefähr in unserem Ausgangszustand. Das ist, auf der Ebene eines Individuums betrachtet, Resilienz. Die Störung hat das System vorübergehend verändert, aber seine grundlegende Struktur und Funktionsfähigkeit nicht dauerhaft zerstört. Nun kann dieselbe Störung aber auch anders ausgehen. Eine Infektion kann bleibende Schäden hinterlassen. Ein Organ kann dauerhaft geschädigt werden, eine neurologische Funktion verloren gehen oder eine chronische Erkrankung zurückbleiben. Das System lebt weiter, kehrt aber nicht mehr vollständig in seinen vorherigen Zustand zurück. Das entspricht dem Prinzip eines Regime Shifts. Und schließlich gibt es eine Grenze, jenseits derer die grundlegende Organisation des Systems nicht mehr aufrechterhalten werden kann. Auf der Ebene eines einzelnen Organismus ist dieser vollständige Kollaps einfach zu definieren: Es ist der Tod.
Aber jetzt wechseln wir die Ebene. Ein einzelner Organismus kann sterben. Eine Population kann verschwinden. Eine Art kann aussterben. Das Leben selbst ist etwas anderes. Das Leben auf der Erde existiert seit mehr als dreieinhalb Milliarden Jahren. In dieser Zeit hat sich die Erde fundamental verändert. Atmosphäre und Ozeane haben ihre chemische Zusammensetzung verändert, Kontinente sind entstanden und wieder zerfallen, das Klima hat zwischen Warmzeiten und globalen Vereisungen gewechselt, Asteroiden sind eingeschlagen und gewaltige Vulkanprovinzen entstanden. Und trotzdem existiert das Leben bis heute. Mehr noch: Es hat auf diese Veränderungen nicht einfach nur mit Überleben reagiert. Es hat sich verändert. Auf dieser Ebene zeigt sich eine völlig andere Form von Resilienz: Evolution.
Organismen müssen nicht unverändert bleiben, damit das Leben fortbesteht. Arten entstehen und verschwinden. Entwicklungslinien spalten sich auf. Neue Stoffwechselwege, neue Baupläne und völlig neue Formen des Lebens entstehen. Und diese evolutionäre Geschichte hat eine geradezu unglaubliche Vielfalt hervorgebracht. Auf der größten Ebene unterscheiden wir traditionell drei Domänen des Lebens: Bakterien, Archaeen und Eukaryoten.
Bakterien und Archaeen sind zwei sehr alte und fundamental unterschiedliche Entwicklungslinien einzelliger Organismen ohne Zellkern. Und dann gibt es die Eukaryoten, Lebewesen mit Zellkern. Zu ihnen gehören Tiere, Pflanzen und Pilze, aber auch eine gewaltige Vielfalt einzelliger Organismen. Das Faszinierende ist, dass die Eukaryoten selbst wahrscheinlich aus einer Verbindung verschiedener Entwicklungslinien hervorgegangen sind.
Eine Zelle archaealer Abstammung nahm ein Bakterium auf und verdaut es nicht. Aus diesen aufgenommenen Bakterien entstanden die Mitochondrien, die Energiekraftwerke unserer Zellen. Später nahm ein früher Eukaryot ein Cyanobakterium auf. Daraus entstanden die Chloroplasten, also die Organellen von Pflanzen, in welchen die Photosynthese abläuft, und damit die Entwicklungslinie, aus welcher Rotalgen, Grünalgen und schließlich sämtliche Landpflanzen hervorgingen.
Andere Eukaryoten nahmen später wiederum bereits photosynthetische Eukaryoten auf. So entstand beispielsweise bei Euglena (kennt man aus dem Biologieunterricht aus unserern Tümpeln) durch die Aufnahme einer Grünalge – die ja ihrerseits bereits aus einer eukaryotischen Zelle und einem aufgenommenen Cyanobakterium hervorgegangen war – eine sekundäre Endosymbiose.
Und bei manchen Dinoflagellaten (also einzelliges marines Plankton) ging es noch eine Stufe weiter: Sie nahmen bereits sekundär photosynthetische Eukaryoten auf – eine tertiäre Endosymbiose. Und viele Korallen haben Dinoflagellaten als photosymbiotische Endosymbionten aufgenommen: damit sind wir bei der quartären Endosymbiose angelangt!
ist also nicht einmal nur ein Baum, dessen Äste sich immer weiter verzweigen. An entscheidenden Stellen haben sich Äste dieses Baumes miteinander verbunden. Und sehr früh in der Evolution der Eukaryoten entstanden bereits jene gewaltigen Entwicklungslinien, innerhalb derer sich später ein großer Teil der für uns sichtbaren Vielfalt entwickelte. Dazu gehören die Archaeplastida mit den Grünpflanzen und Rotalgen, die Amoebozoa mit vielen Amöben und Schleimpilzen und die Obazoa, zu denen sowohl sämtliche Tiere als auch sämtliche Pilze gehören. Daneben stehen riesige Entwicklungslinien, die uns im Alltag kaum bewusst sind. Unter dem Kürzel TSAR werden Telonemia, Stramenopiles, Alveolata und Rhizaria zusammengefasst. Zu den Stramenopilen gehören Kieselalgen und Braunalgen mit den riesigen Tangen der Kelpwälder. Zu den Alveolaten gehören Ciliaten und Dinoflagellaten. Zu den Rhizaria gehören unter anderem die Foraminiferen mit ihren oft wunderschönen Kalkgehäusen. Zu den Haptista gehören die Coccolithophoriden, von denen kaum jemand außerhalb der Meeresbiologen- und Geologenszene jemals gehört hat, aber deren winzige Kalkplättchen über Jahrmillionen mächtige Gebirge aufgebaut haben. Auch die weißen Kreidefelsen von Dover bestehen zu einem erheblichen Teil aus solchen mikroskopischen Überresten. Und zu den Cryptista gehören die Kryptophyten, wichtige einzellige Vertreter des Phytoplanktons. Tiere, Pflanzen und Pilze sind also keineswegs die drei großen Hauptabteilungen des eukaryotischen Lebens. Sie sind nur einige Äste innerhalb einer wesentlich größeren evolutionären Vielfalt und alle diese Gruppen sind von uns Wirbeltieren evolutionär wesentlich weiter entfernt als ein Fliegenpilz. Und diese Vielfalt ist nicht trotz permanenter Veränderung entstanden. Sie ist durch Veränderung entstanden. Das wird besonders deutlich, wenn wir uns die großen Krisen der Erdgeschichte ansehen. Die Big Five, also die fünf großen Massenaussterbeereignisse, sind keineswegs die einzigen großen Krisen in der Geschichte des Lebens. Eine der fundamentalsten Veränderungen überhaupt fand bereits vor ungefähr 2,4 Milliarden Jahren statt: das Great Oxidation Event, die Große Sauerstoffkatastrophe. Cyanobakterien betrieben bereits zuvor Photosynthese und produzierten Sauerstoff. Zunächst wurde dieser Sauerstoff vor allem durch reduzierte Stoffe in den Ozeanen und der Erdkruste gebunden, vor allem Fe2+. Wassergelöstes zweiwertiges Eisen wurde durch den neuen Sauerstoff zu unlöslichem dreiwertigen Eisen oxidiert. Dieses rieselte über Jahrmillionen auf den Meeresboden und entfernte den Sauerstoff wieder aus dem System. Aber irgendwann war das gelöste Eisen aufgebraucht, während das rote dreiwertige Eisen mächtige Sedimentschichten am Meeresboden bildete, welche zu den heute mächtigen roten Eisenerzen in Gebirgen aufgefaltet wurden: die Bandeisenerze. Es begann sich freier Sauerstoff dauerhaft in der Atmosphäre anzureichern. Dieser Übergang erfolgte nicht plötzlich, sondern über viele Millionen Jahre. Für uns ist Sauerstoff die Grundlage fast allen komplexen Lebens. Für die damalige, weitgehend anaerobe Biosphäre war er jedoch ein hochreaktives Zellgift. Wir können das damalige Ausmaß des Artensterbens mangels eines entsprechenden Fossilberichts nicht quantifizieren, aber die ökologische Umwälzung muss gewaltig gewesen sein. Ein Kollaps? Oder Resilienz des Lebens? Gleichzeitig eröffnete Sauerstoff völlig neue Möglichkeiten der Energiegewinnung und bereitete langfristig den Weg für komplexes eukaryotisches Leben. Auch für die kambrischen Explosion (plötzliches Auftauchen großer biologischer Vielfalt) vor etwa 539 Millionen Jahren, bei der innerhalb geologisch kurzer Zeit zahlreiche grundlegende Tierbaupläne im Fossilbericht erscheinen, waren mehrere vorangegangene Massenaussterben zwingende Voraussetzung. Veränderungen des Meeresspiegels, des Klimas und vor allem wiederholter Sauerstoffmangel in den Ozeanen dürften dabei eine wichtige Rolle gespielt haben. Diese Krisen spielten sich jeweils über Hunderttausende bis Millionen Jahre ab und veränderten die Zusammensetzung der frühen Tierwelt erheblich. Große biologische Krisen begleiten das Leben also beinahe durch seine gesamte Geschichte. Die fünf besonders großen und im Fossilbericht gut dokumentierten Massenaussterben des Phanerozoikums, also des Erdzeitalters des sichtbaren Lebens vom Kambrium bis heute, bezeichnen wir als die „Big Five“, die jeweils das Ende eines geologischen Zeitalters definieren: Ordoviz auf Silur, die spätdevonische Krise, Perm auf Trias, Trias auf Jura und Kreide auf Tertiär bzw. Paläogen.. Bei diesen Ereignissen verschwanden jeweils große Teile der damaligen Artenvielfalt – beim größten, dem Massenaussterben am Ende des Perms, vermutlich mehr als 80 Prozent der marinen Arten. Ganze Entwicklungslinien und ökologische Funktionsgruppen gingen jeweils verloren. Die Ursachen waren sehr unterschiedlich: gewaltiger Vulkanismus, extreme Klimaänderungen, massive Vereisungen und Veränderungen des Meeresspiegels, Sauerstoffmangel und Versauerung der Ozeane – und am Ende der Kreidezeit schließlich der Einschlag eines etwa zehn Kilometer großen Asteroiden, der unter anderem das Ende der Nicht-Vogel-Dinosaurier besiegelte. Häufig wirkten mehrere dieser Mechanismen gleichzeitig und verstärkten sich gegenseitig. Aber immer wieder zeigte sich dasselbe Muster: Bestehende Ökosysteme brachen zusammen, zahlreiche Arten verschwanden und ganze Entwicklungslinien endeten. Die Überlebenden besetzten anschließend die frei gewordenen ökologischen Nischen, und es entstanden neue Arten, neue Lebensgemeinschaften und teilweise völlig neue dominante Gruppen. Ein besonders eindrucksvolles Beispiel sind die Säugetiere. Sie überlebten den Asteroideneinschlag am Ende der Kreidezeit und entwickelten sich anschließend in den frei gewordenen ökologischen Räumen zu einer enormen Formenvielfalt – von Fledermäusen über Wale und Huftiere bis zu den Primaten. Damit zeigt sich ein scheinbares Paradox: Auf einer Ebene kann etwas kollabieren, während auf einer höheren Ebene gerade daraus neue Vielfalt entsteht. Ein Individuum stirbt. Eine Art stirbt aus. Eine ganze Lebensgemeinschaft kann verschwinden. Und trotzdem besteht das Leben fort und reorganisiert sich. Das bedeutet natürlich nicht, dass Massenaussterben für das Leben „gut“ wären. Evolution braucht keine Katastrophe, um Vielfalt hervorzubringen, und verlorene Entwicklungslinien kommen nicht zurück. Aber die Erdgeschichte zeigt uns eine bemerkenswerte Eigenschaft des Lebens: Seine Resilienz beruht nicht darauf, dass alles bleibt, wie es ist. Seine Resilienz beruht darauf, dass es sich verändern kann.
Ökologische Nische
Und jetzt wechseln wir noch einmal die Ebene. Wir betrachten nicht mehr das Leben als Ganzes, sondern konkrete Arten und Lebensgemeinschaften. Warum lebt eine bestimmte Art genau dort, wo sie lebt? Welche Veränderungen kann sie verkraften? Warum sind manche Arten Generalisten und andere hoch spezialisiert? Damit kommen wir zur ökologischen Nische.
Warum lebt eine bestimmte Art genau dort, wo sie lebt – und nicht irgendwo anders? Jede Art stellt bestimmte Ansprüche an ihre Umwelt. Sie benötigt bestimmte Temperaturen, Nahrung, Wasser, Licht, Sauerstoff und Nährstoffe. Im Wasser kommen Faktoren wie Strömung, Salzgehalt, pH-Wert, Wassertiefe oder die Beschaffenheit des Untergrundes dazu. Gleichzeitig muss sich eine Art gegen Konkurrenten behaupten, ihren Fressfeinden entkommen, geeignete Nahrung finden und sich fortpflanzen. Die Gesamtheit dieser Ansprüche und Beziehungen bezeichnen wir als ökologische Nische. Eine ökologische Nische ist kein Ort. Sie ist eher ein mehrdimensionaler Möglichkeitsraum. Stellen wir uns für die Temperatur eine Achse vor, für die Feuchtigkeit eine zweite, für den pH-Wert eine dritte, für die Nahrung eine vierte und so weiter. Irgendwo innerhalb dieses Raumes liegen die Bedingungen, unter denen eine Art existieren kann.
Stenökie und Euryökie
Damit kommen wir zu zwei klassischen Begriffen der Ökologie: Stenökie und Euryökie. Eine stenöke Art verträgt bezüglich eines Umweltfaktors nur einen engen Bereich. Eine euryöke Art verträgt einen breiten Bereich. Bei der Temperatur sprechen wir von stenotherm und eurytherm. Viele Bewohner tropischer Korallenriffe leben beispielsweise innerhalb eines relativ engen Bereichs hoher Wassertemperaturen. Beim Salzgehalt sprechen wir von stenohalin und euryhalin. Ein schönes Beispiel für eine euryhaline Art ist der Lachs. Er wird im Süßwasser geboren, wandert ins Meer, lebt dort jahrelang und kehrt schließlich wieder ins Süßwasser zurück.
Und nun wird es evolutionär interessant. In Teilen der äquatorialen Tropen herrschten über viele Millionen Jahre vergleichsweise konstante klimatische Bedingungen, an manchen Orten vllt. schon seit kurz nach dem Meteoriteneinschlag, z.B. im Daintree Regenwald in Queensland. Dort hatten Organismen gewaltige Zeiträume, um sich immer weiter zu spezialisieren. Eine Pflanze wird von einer bestimmten Tierart bestäubt. Ein Insekt lebt nur auf einer bestimmten Pflanze. Ein Parasit befällt nur einen bestimmten Wirt. Arten spezialisieren sich auf bestimmte Nahrung, bestimmte Höhen im Kronendach, bestimmte Tageszeiten oder ganz bestimmte mikroklimatische Bedingungen. Über Millionen Jahre entstehen dadurch ungeheuer artenreiche und extrem dicht gewobene Netze gegenseitiger Abhängigkeiten.
Ein besonders eindrucksvolles Beispiel sind tropische Korallenriffe. Riffbildende Korallen leben selbst bereits in einer hoch spezialisierten Symbiose mit photosynthetisch aktiven Dinoflagellaten, ihren Zooxanthellen. Dazu kommen hoch spezialisierte Fische, Krebstiere, Mollusken, Würmer, Schwämme, Algen und zahllose weitere Organismen. Manche fressen bestimmte Korallen, andere leben ausschließlich in ihnen, wieder andere reinigen bestimmte Fischarten oder besetzen ganz bestimmte Bereiche des Riffes. Auf kleinstem Raum entsteht dadurch eine enorme Zahl ökologischer Nischen. Aber diese Spezialisierung hat ihren Preis. Je enger die ökologische Nische einer Art ist, desto schwieriger wird es für sie, auf starke Veränderungen gerade dieser Umweltbedingungen zu reagieren. Ein Organismus, der Temperaturen zwischen fünf und dreißig Grad verträgt, besitzt bei einer Temperaturänderung wesentlich mehr Spielraum als einer, dessen gesamte Physiologie auf einen engen Temperaturbereich abgestimmt ist. Gerade hoch spezialisierte und eng miteinander verzahnte Systeme können deshalb gegenüber neuartigen Veränderungen erstaunlich empfindlich sein.
Mitteleuropa und seine Ökosysteme
Mitteleuropa hat eine völlig andere Geschichte. Wenn die äquatorialen Tropen über lange Zeiträume vergleichsweise ruhiges evolutionäres Fahrwasser waren, dann war Mitteleuropa evolutionär gesehen eher ein Kriegsgebiet. Während der Eiszeiten wurden Lebensräume immer wieder vollständig umgebaut. Gletscher rückten vor und wieder zurück. Klimazonen wanderten über den Kontinent. Wälder verschwanden, Tundren entstanden, Arten wurden nach Süden verdrängt und wanderten später wieder zurück. Und zusätzlich haben wir innerhalb eines einzigen Jahres enorme Schwankungen. Ein Organismus in Mitteleuropa muss mit Sommer und Winter, Frost und Hitze, langen und kurzen Tagen sowie starken Schwankungen des Nahrungsangebotes zurechtkommen. Das hat Konsequenzen. Unsere Artenvielfalt ist deutlich geringer als in den Tropen. Gleichzeitig finden wir bei uns viele Organismen, die mit Veränderungen vergleichsweise gut umgehen können. Mitteleuropäische Ökosysteme sind daher anders aufgebaut als beispielsweise ein tropischer Regenwald. Sie sind weniger artenreich und weniger fein verzahnt, dafür leben hier viele robuste Generalisten.
r- und K-Strategien
Damit kommen wir zu einem weiteren klassischen Konzept der Ökologie: den r- und K-Strategen. Ein r-Stratege setzt auf Geschwindigkeit und Masse. Er produziert möglichst viele Nachkommen, wächst schnell, wird früh geschlechtsreif und investiert wenig in das einzelne Individuum. Viele Insekten, einjährige Pflanzen oder kleine Nagetiere liegen eher an diesem Ende des Spektrums. Das ist eine hervorragende Strategie für eine Welt, in der sich die Bedingungen häufig ändern. Wird eine Population stark reduziert oder entsteht plötzlich ein neuer Lebensraum, können solche Arten freie Ressourcen schnell nutzen und ihre Population innerhalb kurzer Zeit wieder aufbauen.
Ein K-Stratege verfolgt vereinfacht die entgegengesetzte Strategie. Er produziert wenige Nachkommen, investiert viel in sie, entwickelt sich langsamer und lebt häufig länger. Der Elefant ist das klassische Beispiel. Die Buchstaben stammen aus der Populationsökologie. r bezeichnet die intrinsische Wachstumsrate einer Population. K bezeichnet die Tragfähigkeit eines Lebensraumes – also die Populationsgröße, die dieser Lebensraum langfristig tragen kann. In der Realität bilden r und K natürlich keine zwei sauber getrennten Schubladen. Es handelt sich vielmehr um unterschiedliche Enden eines Spektrums von Lebensstrategien.
Aber die Unterscheidung zeigt ein wichtiges ökologisches Prinzip. Nach einer schweren Störung profitieren häufig zunächst Arten mit Eigenschaften, die eher am r-Ende liegen: schnelle Fortpflanzung, kurze Generationen, hohe Ausbreitungsfähigkeit. Komplexe, über lange Zeit entstandene Ökosysteme werden dagegen häufig mehr von langlebigen Organismen geprägt, die eher Eigenschaften des K-Endes besitzen. Und daraus entsteht eine wichtige Asymmetrie: Die Arten, die ein zerstörtes Gebiet am schnellsten wieder besiedeln, sind nicht unbedingt jene Arten, die vorher seine komplexe Struktur bestimmt haben.
Feuer und Resilienz
Nachdem wir uns angesehen haben, wie Arten an bestimmte ökologische Nischen angepasst sind und welche unterschiedlichen Lebensstrategien sie verfolgen, kommen wir zur eigentlichen Frage: Wie reagieren ganze Ökosysteme auf Störungen? Störungen sind zunächst nichts Ungewöhnliches. Wälder brennen, Stürme werfen Bäume um, Flüsse treten über die Ufer, Dürren lassen Populationen einbrechen. Entscheidend ist nicht, ob ein Ökosystem gestört wird, sondern was danach passiert. Ein besonders anschauliches Beispiel ist Feuer. Dabei müssen wir zwischen Ökosystemen unterscheiden, für die Feuer eine außergewöhnliche Katastrophe darstellt, und solchen, die sich über Millionen Jahre unter regelmäßig wiederkehrenden Bränden entwickelt haben. Besonders eindrucksvoll habe ich das in Australien erlebt. Dort konnte ich auf relativ engem Raum Busch- und Waldlandschaften in unterschiedlichen Stadien sehen: vor dem Feuer, während beziehungsweise unmittelbar nach dem Feuer und ungefähr ein, fünf oder zehn Jahre danach. Man sieht verschiedene Zeitpunkte desselben ökologischen Prozesses gleichzeitig nebeneinander. Unmittelbar nach einem Buschfeuer wirkt die Landschaft apokalyptisch: schwarze Baumstämme, verbrannte Kronen, freiliegender Boden. Viele australische Eukalypten sind jedoch hervorragend an Feuer angepasst. Zahlreiche Arten besitzen geschützte Knospen unter der Rinde. Aus scheinbar verkohlten Stämmen treiben schon bald wieder grüne Zweige. Andere Pflanzen besitzen unterirdische Regenerationsorgane, sogenannten Lignotuber. Gleichzeitig enthalten Eukalyptusblätter flüchtige ätherische Öle, die den Flammpunkt senken und zu einem rasch abbrennenden, Feuer mit verhältnismäßig niedriger Temperatur führen. Der Wald ist also nicht einfach trotz des Feuers entstanden – seine Evolution ist eng mit Feuer verbunden. Bei manchen Banksien bleiben Samen lange in verholzten Fruchtständen gespeichert und werden unter den Bedingungen eines Feuers freigesetzt. Bei anderen australischen Pflanzen fördern Hitze oder chemische Stoffe aus dem Rauch die Keimung. Das Feuer zerstört also Vegetation und schafft gleichzeitig Bedingungen für die nächste Generation. Nach einem Jahr dominieren offene Flächen, Gräser, Kräuter und schnell wachsende Pionierarten. Hier sind Organismen im Vorteil, die wir vereinfacht eher den r-Strategen zuordnen: schnelle Vermehrung und schnelle Nutzung frei gewordener Ressourcen. Nach einigen Jahren schließen sich die Strauchschichten, Bäume wachsen heran, Konkurrenz um Licht und Raum nimmt zu und die Nahrungsnetze werden komplexer. Nach fünf oder zehn Jahren kann bereits wieder geschlossener Busch oder Wald entstanden sein. Und irgendwann brennt er erneut. Der natürliche Zustand ist deshalb nicht unbedingt ein überall gleich alter Wald. Das Mosaik verschiedener Sukzessionsstadien ist selbst Teil des Ökosystems. Dasselbe Feuer kann in Mitteleuropa in einem evolutionär kaum an Feuer angepassten Wald völlig anders wirken. Dort können Strukturen verloren gehen, deren Wiederentstehung Jahrzehnte oder Jahrhunderte benötigt. Ob eine Störung katastrophal ist, hängt also nicht nur von ihrer Stärke ab, sondern auch von der evolutionären Geschichte des Systems.
Sukzession und Ökosystemingenieure
Ein extremes Beispiel für Sukzession, Erholung nach dem Kollaps, liefert Krakatau. Nach der gewaltigen Eruption von 1883 waren große Flächen weitgehend entvölkert. Danach begann die Wiederbesiedlung. Zuerst kamen Organismen, die große Entfernungen überwinden konnten: Sporen, Samen, Insekten und andere kleine Tiere. Pflanzen etablierten sich, Tiere folgten, Böden und schließlich komplexere Nahrungsnetze entstanden. Das ist streng genommen keine Resilienz, sondern Primärsukzession. Es zeigt aber ein wichtiges Prinzip: Arten besiedeln einen Lebensraum nicht nur, sie verändern ihn auch. Pflanzen stabilisieren Böden. Wälder erzeugen ihr eigenes Mikroklima. Korallen bauen Riffe. Biber stauen Flüsse. Kelp bildet dreidimensionale Unterwasserwälder. Solche Organismen wirken als Ökosystemingenieure. Ihr Verschwinden kann deshalb Auswirkungen haben, die weit über die betreffende Art hinausgehen.
Seeotter, Seeigel und Kelp
Ein klassisches Beispiel finden wir im Nordpazifik. Seeotter, Enhydra lutris, fressen Seeigel. Seeigel fressen wiederum Kelp, beispielsweise den Riesentang Macrocystis pyrifera. Solange genügend Seeotter vorhanden sind, kontrollieren sie die Seeigelpopulationen und ermöglichen ausgedehnte Kelpwälder. Im 18. und 19. Jahrhundert wurden Seeotter wegen ihres dichten Fells massiv bejagt. Ihre Populationen brachen in weiten Teilen ihres Verbreitungsgebietes zusammen. Damit entfernte der Mensch unbeabsichtigt einen zentralen Regulator des Systems. Weniger Seeotter führten zu mehr Seeigeln und damit zu stärkerem Fraß am Kelp. Bei hoher Seeigeldichte kann aus einem produktiven dreidimensionalen Kelpwald ein sogenanntes urchin barren werden – eine kahle, von Seeigeln dominierte Unterwasserlandschaft. Nach dem Schutz der Seeotter konnten sich manche Populationen und teilweise auch die Kelpwälder wieder erholen. In Teilen Alaskas und der Aleuten kam es später erneut zu starken Rückgängen der Seeotter. Dort gilt die Prädation durch Orcas, Orcinus orca, als wichtige Ursache. Damit erhalten wir eine bemerkenswerte Wirkungskette: Orca → Seeotter → Seeigel → Kelp. Eine Veränderung beim Spitzenprädator kann über mehrere trophische Ebenen darüber entscheiden, ob am Meeresboden ein Kelpwald oder eine kahle Seeigellandschaft existiert. Das nennen wir eine trophische Kaskade.
Regime Shift
Damit kommen wir zu einem zentralen Konzept: dem Regime Shift. Man kann ihn sich mit einem Apfel und zwei Schüsseln vorstellen. Auf einem Tisch steht eine Schüssel, darin liegt ein Apfel. Der Apfel repräsentiert den Zustand unseres Ökosystems, die Schüssel seinen stabilen Zustandsbereich. Ich schüttle die Schüssel. Bei kleinen Störungen rollt der Apfel hin und her und anschließend wieder zurück. Auch stärkere Störungen kann das System verkraften, solange der Apfel in der Schüssel bleibt. Das ist Resilienz. Jetzt schüttle ich so stark, dass der Apfel über den Rand fliegt. Der Kipppunkt ist überschritten. Neben dem Tisch steht am Boden der Fressnapf meines Hundes, die zweite Schüssel. Der Apfel fällt hinein – und bleibt dort. Die Störung ist vorbei, aber der Apfel kehrt nicht zurück. Er befindet sich jetzt in einem anderen Stabilitätsbecken. Das ist ein Regime Shift.
In der Natur lässt sich das besonders gut an flachen Seen zeigen. In einem klaren See wachsen beispielsweise Laichkräuter der Gattung Potamogeton und Armleuchteralgen der Gattung Chara. Sie stabilisieren das Sediment, binden Nährstoffe und bieten Zooplankton Schutz vor Fischen. Große Wasserflöhe wie Daphnia filtrieren wiederum Phytoplankton aus dem Wasser. Mehr Makrophyten begünstigen klares Wasser, und klares Wasser begünstigt wiederum Makrophyten. Nun erhöhen wir langsam den Phosphoreintrag. Zunächst kann der See diese Belastung abpuffern. Mit zunehmender Nährstoffbelastung wächst jedoch mehr Phytoplankton. Das Wasser wird trüber, weniger Licht erreicht den Grund und die Makrophyten verschwinden. Dadurch wird Sediment leichter aufgewirbelt, das Zooplankton verliert Rückzugsräume und unter Sauerstoffmangel kann zusätzlich Phosphor aus dem Sediment mobilisiert werden. Mehr Phosphor bedeutet mehr Phytoplankton, mehr Phytoplankton weniger Licht und weniger Licht wiederum weniger Makrophyten. Eine positive Rückkopplung entsteht. Schließlich kippt das System vom klaren, makrophytenreichen in einen trüben, phytoplanktondominierten Zustand.
Und jetzt kommt die Hysterese. Nehmen wir rein illustrativ an, der See kippt bei einer Phosphorbelastung von 100. Man könnte erwarten, dass eine Reduktion auf 99 genügt, damit er wieder klar wird. Das muss aber nicht passieren. Der trübe See besitzt inzwischen eigene stabilisierende Rückkopplungen. Vielleicht muss die Belastung auf 70 oder 50 reduziert werden, bevor die Makrophyten zurückkehren. Damit können bei einer gedachten Belastung von 70 sogar zwei verschiedene Zustände möglich sein: Ein See, der nie gekippt ist, kann klar sein. Ein zuvor eutrophierter See kann bei derselben Belastung trüb bleiben. Der Zustand eines Ökosystems hängt also nicht nur von seinen gegenwärtigen Umweltbedingungen ab, sondern auch von seiner Geschichte. Das ist Hysterese. Bei unserem Apfel ist es anschaulich: Es war relativ leicht, ihn aus der Schüssel auf dem Tisch zu werfen. Jetzt liegt er aber unten im Hundenapf. Um ihn zurückzubekommen, reicht es nicht, die ursprüngliche Störung einfach umzukehren. Der Weg zurück ist nicht derselbe wie der Weg hin.
Dasselbe Prinzip finden wir bei Korallenriffen. Riffbildende Steinkorallen schaffen die dreidimensionale Struktur des Lebensraums. Pflanzenfresser wie Papageifische, Doktorfische und bestimmte Seeigel halten gleichzeitig Algen in Schach. Stirbt eine Koralle, konkurrieren Algen und junge Korallen um die frei gewordene Oberfläche. Sind genügend Pflanzenfresser vorhanden, werden die Algen kurz gehalten und Korallen können sich wieder ansiedeln. Werden jedoch gleichzeitig viele Korallen geschädigt und die Pflanzenfresser stark reduziert, können Makroalgen die freien Flächen übernehmen. Diese erschweren wiederum die Ansiedlung neuer Korallen. Aus einem korallendominierten kann dadurch ein algendominiertes Regime werden.
Damit kommen wir zurück zum letzten Begriff aus dem Titel: Kollaps. Ein Regime Shift ist nicht automatisch ein Kollaps. Ein klarer See kann in einen trüben Zustand übergehen, der seinerseits über lange Zeit stabil bleibt. Von einem ökologischen Kollaps sprechen wir, wenn die charakteristischen Strukturen, Lebensgemeinschaften und Funktionen eines Ökosystems so weit verloren gehen, dass das ursprüngliche System nicht mehr aufrechterhalten werden kann. Und auch dann ist nicht zwangsläufig alles tot. Nach dem Verlust eines Waldes können Gräser wachsen. Nach dem Verlust eines Korallenriffs können Algen die Flächen besiedeln. Gerade schnell wachsende, opportunistische Arten, also unsere r-Strategen, können von solchen Veränderungen profitieren. Das Problem liegt bei den komplexen, langsam entstehenden Strukturen. Ein großer Baum benötigt Jahrzehnte oder Jahrhunderte. Viele Arten riffbildender Korallen benötigen lange Zeiträume, um komplexe Riffe aufzubauen. Viele große Tiere vermehren sich langsam. Daraus entsteht eine fundamentale Asymmetrie: Komplexität kann sehr langsam entstehen und sehr schnell verloren gehen. Ein Wald kann zu Grasland werden, ein Kelpwald zur Seeigellandschaft, ein Korallenriff zum Algenriff und ein klarer See zum trüben See. Das Leben geht weiter. Aber das Ökosystem, das vorher existiert hat, kann verschwunden sein.
Was können wir aus all dem mitnehmen? Wir haben Resilienz auf unterschiedlichen Ebenen betrachtet. Auf der Ebene des einzelnen Organismus bedeutet Resilienz, eine Störung zu überstehen und seine Funktionsfähigkeit wiederherzustellen. Auf der Ebene des Lebens bedeutet Resilienz etwas noch Grundsätzlicheres. Arten können entstehen und verschwinden, ganze Entwicklungslinien können aussterben, und trotzdem besteht das Leben seit Milliarden Jahren fort, weil es sich evolutionär verändern kann. Und schließlich haben wir gesehen, dass auch ganze Ökosysteme erhebliche Störungen verkraften können, ohne in ein anderes ökologisches Regime überzugehen. Ein feuerangepasster australischer Wald kann brennen und sich wieder regenerieren. Ein See kann zunehmende Nährstoffeinträge über lange Zeit abpuffern und trotzdem klar bleiben. Aber diese Fähigkeit ist nicht unbegrenzt.
Damit sind wir für mich beim vielleicht wichtigsten Gedanken dieser Zeichnung: Stabilität und Resilienz sind nicht dasselbe. Solange unser Apfel ruhig in seiner Schüssel liegt, sehen wir nur, dass das System stabil ist. Wir sehen aber nicht, wie tief die Schüssel ist. Wir sehen nicht, wie nahe der Apfel bereits am Rand liegt. Und wir sehen möglicherweise auch nicht, dass dieser Rand durch zunehmende Belastungen immer niedriger wird. Ein Ökosystem kann deshalb über Jahrzehnte scheinbar stabil bleiben, obwohl seine Resilienz bereits immer weiter abnimmt. Und irgendwann kommt eine weitere Störung. Vielleicht keine besonders große. Aber sie reicht aus. Der Apfel fällt über den Rand. Und das System, das eben noch stabil erschien, befindet sich plötzlich in einem anderen Zustand.
Was wir als dauerhaften Zustand wahrnehmen, ist in der Geschichte des Lebens oft nur eine kurze Episode zwischen grundlegenden Veränderungen. Die Natur befindet sich nicht in einem Gleichgewicht, das gelegentlich gestört wird. Sie ist ein fortwährender Prozess, in dem selbst Gleichgewichte nur vorübergehend sind. Und ob wir dabei von Resilienz, Veränderung oder Kollaps sprechen, hängt letztlich davon ab, welche Ebene des Lebens wir betrachten – und welchen Zeitraum wir zum Maßstab nehmen.
Aus unserer menschlichen Perspektive können wir diese Grenze aber sehr konkret ziehen: anhand der Ökosystemleistungen – der Ecosystem Services, die wir von einem Ökosystem erhalten. Ein Ackerboden ist resilient, solange er fruchtbar bleibt. Ein Gewässer, solange es weiterhin Fische hervorbringt und sauberes Wasser liefert. Ein Wald, solange er Holz und Wild liefert, Wasser speichert und vor Erosion, Hochwasser oder Lawinen schützt. Oder solange er Erholungswert hat.
Resilienz bedeutet aus dieser Perspektive, dass ein Ökosystem trotz Störungen seine für uns wesentlichen Leistungen weiterhin erbringen kann.
Kollaps beginnt dort, wo es diese Leistungen dauerhaft nicht mehr erbringen kann.
Und damit wird aus einem zunächst abstrakten ökologischen Begriff eine sehr konkrete Frage: Was kann ein Ökosystem verlieren, bevor auch wir verlieren, was wir von ihm brauchen?